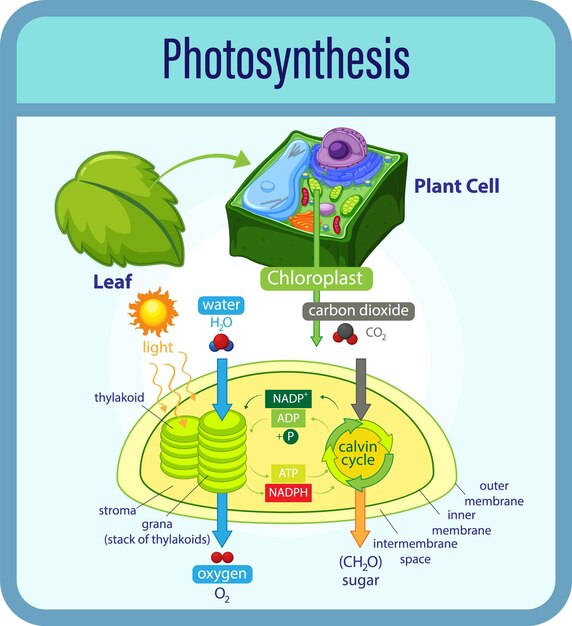
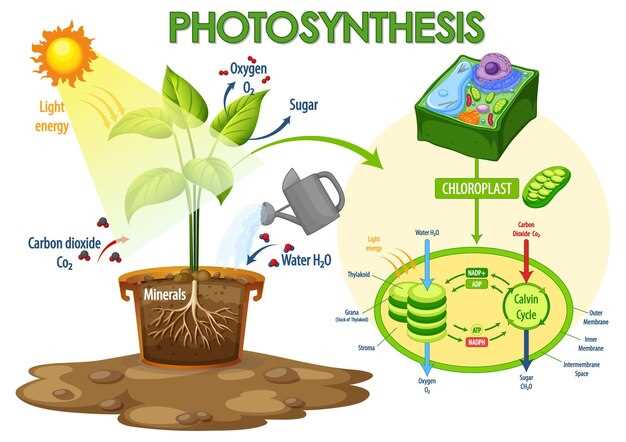
Рекомендуется рассматривать углерод как основной строительный материал для фотосинтеза. Этот процесс начинается с поглощения диоксида углерода из воздуха через устьица листьев, что обеспечивает источник сырья для последующих преобразований.
Значимой роль играет система хлоропластов, где внутри происходит фотосинтез – цепочка реакций, в ходе которых CO2 превращается в органические соединения, такие как глюкоза. Этот этап активно регулируется ферментами, среди которых ключевым считается рибулозо-1,5-бисфосфаткарбоксилза.
Во время световых реакций растения используют солнечный свет для возбуждения электронов, что создаёт энергию для фиксации углерода и синтеза глюкозы. Таким образом, источник углерода не только обеспечивает рост и развитие, но и служит фундаментом для производства кислорода, что поддерживает баланс экосистем.
Как растению поступает углерод для фотосинтеза
Растения добывают углерод преимущественно через устьица, которые представляют собой маленькие поры на поверхности листьев и stems. Влага и газы проходят через эти отверстия, что позволяет углекислому газу (CO?) попадать внутрь растения.
В течение дня CO? диффундирует из воздуха внутрь устьиц и заполняет межклеточные пространства листа. Именно здесь кислород и углекислый газ попадают в клетки фотосинтезирующих ткани, такие как фотосинтезирующие клетки хлоропластов.
Через стенки клеток CO? диффундирует внутрь цитоплазмы и затем попадает прямо в тилакоидные мембраны. Там происходит основное превращение углерода, при этом фотосинтез превращает CO? в органические вещества, используя энергию света и воду.
Для эффективного поступления углерода растение регулирует открытие и закрытие устьиц в зависимости от условий. В сухую и жаркую погоду устьица часто закрываются, чтобы избежать потери влаги, что немного замедляет поступление CO?, однако помогает сохраните воду.
В результате растению удается балансировать между потребностью в углероде для синтеза органических соединений и сохранением водных ресурсов. Этот процесс строго регулируется гормональными сигналами, позволяя максимально использовать поступающий CO? в разные периоды дня и при разных климатических условиях.
Механизм поглощения диоксида углерода через устьица
Устьица образуют регулируемые отверстия на поверхности листа, позволяющие газам входить и выходить из растения. Процесс начинается с открытия устьиц, что регулируется движением специальных клеток – гидатид.
Когда клетки устьиц набухают, из-за повышения внутреннего тургора они расширяются и раскрывают отверстия. Это происходит под воздействием ионных изменений: повышение концентрации калия и осмотическое давление приводят к притоку воды внутрь клеток. В результате клетки растягиваются и создают путь для диоксида углерода.
Поглощение CO? происходит через мелкие поры, расположенные на внутренних стенках устьиц. В среднем, за сутки через устьица проходит около 5-10% всей поступающей в растение газовой массы. Концентрация углекислого газа в межклетниках достигает уровня, который стимулирует замыкание устьиц и снижение потерь воды – это важное адаптивное действие.
Механизм закрытия устьиц активируется при низкой концентрации CO? внутри листа, а также в условиях засухи или высоких температур. В этом случае клетки устьиц теряют тургор, сокращая отверстия и уменьшая приток газа, что помогает снизить испарение.
Обеспечивая эффективный баланс между поглощением CO? и сохранением воды, устьица играют ключевую роль в регуляции фотосинтеза и водного режима растений. Частота открытия и закрытия устьиц определяется комплексом сигналов, включающих уровень CO?, световые условия и влажность воздуха.
Роль транспирации в регуляции доступности CO?
Транспирация играет ключевую роль в открытии и закрытии устьиц, что влияет на поток CO? в листьях. Повышение температуры или снижение влажности воздуха вызывает увеличение транспирации, что стимулирует устьица к открытому состоянию и обеспечивает приток CO?. Для оптимизации этого процесса растения могут регулировать водный баланс, сокращая транспирацию в условиях засухи, чтобы сохранить воду, и увеличивая её при необходимости обеспечить достаточный поступок углекислого газа.
Активность устьиц напрямую зависит от концентрации соли и осмотического давления в клетках, что позволяет растениям быстро реагировать на изменения окружающей среды. В периоды высокой транспирации устьица остаются открытыми дольше, что способствует дополнительному поглощению CO?, но при этом увеличивает потерю воды. Методы контроля этой балансировки помогают растению адаптироваться к временам ограниченной влаги, снижая потери, сохраняя возможность фотосинтеза.
Механизмы, управляющие транспирацией, включают как гормональные сигналы, так и механическую реакцию клеток, что обеспечивает тонкую настройку в зависимости от условий. Влияние освещения, температуры и влажности создает динамическую систему, в которой растения используют транспирацию для регулировки входа CO?. Правильное управление этим процессом позволяет повышать эффективность фотосинтеза, минимизируя излишние потери воды и сохраняя энергетические ресурсы.
Альтернативные источники углерода для специальных условий
Использование диатомовых водорослей и некоторых видов цианобактерий позволяет растениям поглощать углерод из минеральных источников, таких как карбонаты и бикарбонаты. Такой подход подходит для гидропонных систем и закрытых циклов, где концентрация CO? ограничена.
При выращивании в условиях высокой концентрации CO?, можно стимулировать использование растворимых форм углерода, например, кислотных растворений бикарбонатов, что обеспечивает стабильную подачу источника для фотосинтеза без необходимости увеличения вентиляции.
Инжекции растворимых форм углерода, таких как натриевые соли или другие содовые соединения, активируют фиксацию углерода в корневой системе и окружающей среде, увеличивая скорость роста и общую продуктивность растений.
Особое значение имеет применение наноразмерных частиц карбонатов, способных проникать в ткани растений и участвовать в фотосинтетической активности, что особенно актуально в зонах с дефицитом CO?.
Для культур, чувствительных к условиям высокой кислотности, используют щелочные концентраты бикарбоната натрия или кальция, которые позволяют контролировать уровень pH и обеспечивают дополнительный источник углерода.
В лабораторных условиях разрабатываются генетические модификации растений, позволяющие им использовать альтернативные формы углерода, такие как органические соединения или даже растворённые простые сахара, увеличивая их фотосинтетическую эффективность в условиях ограниченного доступа к CO?.
Переработка и использование углерода внутри растения
Растения активно преобразуют входящий углерод, чтобы поддерживать рост и развиваться. После фотосинтеза молекулы сахаров, таких как глюкоза, транспортируются в разные части растения, где служат исходным материалом для синтеза клеточных компонентов. В первую очередь, глюкоза используется для производства АТФ – основной энергетической валюты клетки – через процесс гликолиза и окислительного фосфорилирования. Это обеспечивает энергию для поддержки жизнедеятельности и роста тканей.
Современные исследования показывают, что часть глюкозы перерабатывается в полисахариды, такие как крахмал, который аккумулируется в хранилищах – корнях, клубнях и семенах. Это обеспечивает запасы энергии, которую можно использовать в периоды недостатка света или роста. Другие сахара, например фруктоза и сахароза, распределяются по всему растению через сосудистую систему, участвуя в регуляции обменных процессов и поддержании водного баланса.
При внутренних переработках углерода происходит синтез целлюлозы, которая формирует клеточные стенки и задает структуру растению. В процессе этого участвуют ферменты, активирующие углеродистые основы, чтобы обеспечить прочность и защиту тканей. В некоторые периоды развития растение также использует углерод для синтеза вторичных метаболитов, таких как фитонциды и пигменты, важно увеличивающие устойчивость к стрессам.
Комплексная переработка углерода включает его одновременное участие в наращивании тканей и формировании энергетических запасов. Такой подход гарантирует, что растение сможет адаптироваться к меняющимся условиям, поддерживать рост и эффективно использовать ресурсы, поступающие из окружающей среды.
Фиксация углерода в цикле Кальвина: основные этапы и роль ферментов
Начинается процесс фиксации углерода с присоединения молекулы CO? к молекуле рибулозо-1,5-бисфосфата (RuBP), что катализирует фермент фосфоенолпируват карбоксилаза-оксигеназа (Рубиско). Этот этап образует нестабильный промежуточный продукт – 3-фосфоглицералдегид, который быстро превращается в триозу – глицеральдегид-3-фосфат.
Более 80% всей фиксации углерода в цикле происходит благодаря активности Рубиско, которая обеспечивает присоединение СО? к RuBP. Этот процесс регулирует скорость этапа, зависящую от концентрации CO?, а также от состояния фермента и условий внутри хлоропластов.
На следующем этапе триоза преобразуется в глюкозу и другие углеводы через серию реакций, в которых участвуют ферменты, такие как триозофосфат изомераза и триозфосфатсинтаза. Эти реакции восстанавливают циклическое использование молекул, обеспечивая повторное участие RuBP в процессе фиксации.
Ключевую роль играет фермент фосфоглицератэтмутаза, который преобразует 3-фосфоглицерат в глицеральдегид-3-фосфат, способствуя его выхода из цикла. Это позволяет растениям синтезировать важные биомолекулы и запасать энергию.
Регуляция активности ферментов, особенно Рубиско, осуществляется через изменение концентрации ионизированного магния, pH и метаболитных эффектов. Повышение уровней CO? стимулирует активность, увеличивая скорость фиксации и синтеза органических соединений.
Обучение тонкостям работы этих ферментов помогает понять, как растения максимально используют доступный углерод, а изменение условий роста может значительно влиять на эффективность цикла Кальвина и общую продуктивность растительной клетки.
Трансформация фиксированного углерода в органические соединения
Для этого из 3-ПГ образуются триуглеродные сахара, такие как глюкоза, фруктоза и глюкозо-6-фосфат. Эти сахара легко подключаются к цепям, образуя полисахара, аминокислоты и нуклеотиды. Процесс включает серию ферментативных реакций, включающих три простых шага:
- Активация 3-ПГ в трисахаридах – глицеральдегид-3-фосфат соединяется с другими молекулами для формирования фруктозо-1,6-бисфосфата, который затем расщепляется на два трисахарида: дигидроксиацетонфосфат и ГФФ.
- Образование треглицеридов и сахаров – глюкоза-6-фосфат превращается в глюкозу и фруктозу, которые накапливаются или используются для синтеза полисахаридов, таких как крахмал и целлюлоза.
- Вырождение и синтез аминокислот – в результате превращения ГФФ в кислоты и аминокислоты, такие как глицин, аланин, что обеспечивает запасы предшественников для белкового синтеза и метаболических путей.
Высокоэффективное управление этими превращениями позволяет растениям накапливать необходимые органические соединения, поддерживая обмен веществ и рост. Использование ферментов, таких как фосфоглиукозоизомераза и фруктозо-1,6-бисфосфатази, ускоряет переход от триасахаридов к более сложным молекулам, что делает процесс трансформации максимально продуктивным.
Понимание механизма превращения фиксированного углерода в органику открывает возможности для манипуляции растительными метаболическими путями, увеличения урожайности и создания устойчивых сельскохозяйственных систем. Способность растений преобразовывать и сохранять углерод в виде сложных соединений позволяет им адаптироваться к различным экологическим условиям и обеспечивать поддержку биосистемы в целом.
Роль накопления углерода в энергетическом обмене растений
Обеспечивая запас углерода в форме органических соединений, растения создают энергоемкое резервное хранилище, которое используют для поддержания жизнедеятельности в условиях нехватки света или воды. Этот запас, как правило, представлен крахмалом или сахарами, позволяет быстро накапливать энергию в моменты активного фотосинтеза и расходовать её в периоды покоя или роста.
Накопленный углерод становится топливом для процессов роста, формировки тканей и производства биомассы. Он участвует в синтезе АТФ через метаболические пути, обеспечивая работу клеточных мембран, активный транспорт веществ и биосинтез важных молекул. Без достаточного углеродного запаса эффективность энергетического обмена существенно снижается, что тормозит развитие растения.
Роль этого процесса особенно заметна в условиях ограниченного поступления света или в периоды низкой активности фотосинтеза. В такие моменты растение использует депонированный углерод для поддержания метаболизма, предотвращая энергетический кризис. Это позволяет проходить периоды стресса и быстро восстанавливаться после его преодоления.
Обеспечение балансирования между накоплением и расходованием углерода становится ключевым фактором, влияющим на выживаемость и продуктивность растений. Правильная стратегия запаса углерода выбранной растительной тканью позволяет оптимизировать энергетические затраты и повысить устойчивость к неблагоприятным условиям.
Фактически, способность растений аккумулировать углерод и грамотно его использовать выбирает их адаптивные возможности и определяет эффективность энергетического обмена в долгосрочной перспективе. Эти механизмы позволяют растениям рационально распределять ресурсы, поддерживая устойчивость экосистем и стабильное развитие.
Вклад углерода в синтез растительных тканей и запасных веществ
Углеродный обмен играет ключевую роль в формировании структурных элементов растений. В процессе фотосинтеза растения используют молекулы CO? для синтеза глюкозы, которая превращается в полисахариды, такие как крахмал и целлюлоза. Эти вещества служат основой для построения клеточных стенок и тканей, обеспечивая механическую прочность и долговечность растений.
Глюкоза, образующаяся в ходе фотосинтеза, активно участвует в метаболических путях, например, при образовании и аккумуляции запасных веществ. Крахмал накапливается в корнях, клубнях и семенах, выступая как концентрированный источник энергии, который растения используют в периоды отсутствия света или неблагоприятные условия.
Роль углерода в синтезе тканей расширяется за счет формирования новых клеток. Он способствует синтезу органических соединений, участвующих в создании тканей ростковых зон и листовых пластинок. В ходе этого процесса происходит активное использование углерода для построения структур, а также для укрепления существующих тканей.
Кроме того, углерод участвует в синтезе вторичных веществ, таких как лигнин и фенолы, которые усиливают защитные свойства растений и участвуют в формировании древесины. В результате, количество и качество запасных веществ напрямую зависят от уровня поступления углерода, что влияет на устойчивость и развитие растений в различных условиях.
Оптимизация процессов использования углерода для синтеза тканей и запасных веществ позволяет повысить урожайность и устойчивость растений. В этом направлении активно исследуют механизмы регуляции метаболизма углерода, чтобы эффективно управлять ростом и развитием культурных растений.